

VMP 20.12.2018

Иммунология: структура и функции иммунной системы: учебное пособие / Р.М. Хаитов. – 2013. – 280 с.
Глава 1. ОСНОВНЫЕ ПОЛОЖЕНИЯ
Иммунитет – особое биологическое свойство многоклеточных организмов, направленное на защиту от генетически чужеродных факторов: микроорганизмов (бактерий, вирусов, простейших, грибов), инородных молекул и др. Иммунитет также обеспечивает невосприимчивость организма к инфекции при повторной встрече с патогеном. В медицинском смысле этот термин употребляли ещё до нашей эры в значениях: неприкосновенный, чистый, не затронутый заболеванием, невредимый, находящийся под хорошей защитой, устойчивый к заразной болезни.
Совокупность органных, тканевых, клеточных и молекулярных компонентов, функцией которых является осуществление иммунной защиты, называется иммунной системой. Иммунология – наука о строении и функциях иммунной системы как в норме, так и при различных патологических состояниях, в том числе и при нарушениях самой иммунной системы – иммунопатологиях.
Иммунную защиту обеспечивают два механизма: врождённый и адаптивный.
Врождённый иммунитет является присущей каждому организму с рождения, генетически закреплённой способностью противостоять инфекции. Это передовая линия обороны организма против патогенов, пытающихся проникнуть или уже проникших в покровные ткани или внутреннюю среду. Врождённый иммунитет срабатывает мгновенно или в течение первых нескольких часов после контакта с патогеном (возбудители, выделяемые ими токсины и другие чужеродные молекулы). Он включает четыре основных уровня защиты: анатомический, физиологический, фагоцитарный и воспалительный – покровные ткани, фагоциты, микробоцидные гуморальные вещества (протеазы, сильные окислители и свободные радикалы, продуцируемые фагоцитами, эндогенные противомикробные пептиды и др.), сосудистые реакции. Первичные рецепторы врождённого иммунитета – это молекулы многоклеточных, позволяющие «считывать» эволюционную память – информацию о том, чем отличаются микроорганизмы от собственных клеток.
Эти рецепторы способны распознавать консервативные молекулярные структуры – РАМР (Pathogen-Associated Molecular Patterns), характерные для групп сходных микроорганизмов. В настоящее время постоянно открывают новые патогенраспознающие рецепторы врождённого иммунитета. К ним относят мембраносвязанные паттернраспознающие рецепторы (Pattern Recognition Receptors, PRR), а также растворимые рецепторы – ряд белков сыворотки крови: C-реактивный белок (СРБ), маннозосвязывающий лектин (MBL – Mannose-Binding Lectin), компоненты комплемента.
Собственные возможности клеток врождённого иммунитета санировать организм от проникшего патогена часто недостаточны. Множество патогенов приспособилось выживать в присутствии факторов врождённой резистентности к инфекциям. Именно поэтому в процессе эволюции, начиная с челюстных рыб, к врождённому иммунитету добавился адаптивный иммунитет – специфический. Материальные носители адаптивного иммунитета – лимфоциты. Уникальное и отличительное свойство лимфоцитов как множества клеток – способность распознавать почти неограниченное (1018) разнообразие молекулярных объектов – антигенов. Лимфоциты характеризуются экспрессией Т-клеточных (TCR) или В-клеточных (BCR) рецепторов, распознающих только одну антигенную детерминанту либо небольшое число структурно очень близких детерминант, и поэтому, в отличие от PRR, обладающих высокой специфичностью (рис. 1-1).
Адаптивный (приобретённый) иммунитет формируется в течение жизни индивидуума. Активно приобретённый иммунитет – состояние невосприимчивости к инфекции после перенесённого инфекционного заболевания или после вакцинации (сам организм вырабатывает соответствующие антитела). Пассивно приобретённый иммунитет – состояние невосприимчивости к инфекции в результате поступления в организм уже готовых антител от матери или в результате инъекции (сам организм эти антитела не вырабатывает).
ИММУННЫЙ ОТВЕТ
Врождённая и адаптивная системы защиты организма включают клеточный и гуморальный компоненты и активно взаимодействуют друг с другом в процессе иммунного ответа. Иммунный ответ – многоэтапный процесс, заключающийся в распознавании и деструкции патогена и повреждённых им тканей. В его основе лежит уникальное свойство иммун-
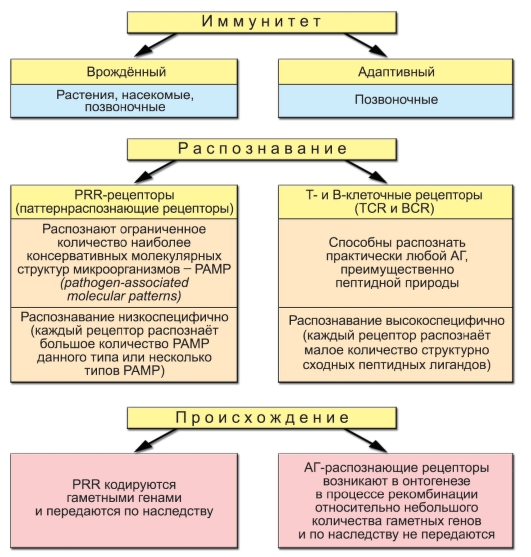
Рис. 1-1. Сравнение врождённого и адаптивного иммунитета
ной системы отличать «свое» («sef») от «чужого» («nonself») и применять по отношению к «чужому» механизмы нейтрализации и уничтожения, а именно – иммунные реакции. Распознавание множества чужеродных антигенов происходит благодаря наличию в организме огромного разнообразия образующихся в тимусе клонов T-лимфоцитов (отбор клонов) и при помощи комплекса генов главного комплекса гистосовместимости (MHC) классов I и II. Нейтрализацию «чужого» осуществляют цирку-
лирующие в жидкостях организма антитела (гуморальный иммунитет) и цитотоксические лимфоциты (клеточный иммунитет).
Таким образом, основными характеристиками адаптивного иммунного ответа являются умение различать собственные антигены от чужеродных, специфичность и иммунная память.
• Различение «своего» и «чужого» выражается в дифференциации компонентов собственных тканей организма и чужеродных молекул. Специфическую неотвечаемость организма на собственные антигены обозначают как иммунную толерантность. Если же организм воспринимает собственные компоненты как чужеродные, развивается аутоиммунный ответ.
• Специфичность иммунного ответа проявляется в том, что иммунитет, сформировавшийся в результате контакта с определённым антигеном, будет обеспечивать защиту только против этого антигена.
• Иммунная память формируется в результате адаптивного иммунного ответа против конкретного возбудителя и сохраняется, как правило, в течение всей последующей жизни организма, защищая его от повторной инфекции, вызываемой этим же возбудителем. Такой механизм обеспечивается способностью иммунной системы к «запоминанию» антигенных детерминант патогена за счёт образования клеток иммунной памяти. Наличие иммунной памяти обусловливает развитие ускоренного и усиленного ответа (вторичный иммунный ответ) при повторном контакте с антигеном. Формирование иммунной памяти является основной целью вакцинации, т.е. процесса естественного или искусственного формирования иммунной защиты против определённой инфекции.
Схема развития иммунного ответа представлена на рис. 1-2. Содержание отдельных этапов иммунного ответа раскрыто ниже.
• Воспаление: участвуют клетки, поглощающие антигены (фагоциты, антигенпрезентирующие клетки) – в частности, дендритные клетки (ДК), макрофаги, эндотелиальные и другие клетки. Выделяются провоспалительные цитокины и хемокины.
• Переработка антигена (процессинг). После поглощения антигена антигенпрезентирующей клеткой (АПК) происходит его процессинг (расщепление и встраивание в молекулы MHC) и презентация на поверхности клетки. Это необходимо для распознавания антигена Т-лимфоцитами.
• Распознавание антигена происходит в периферических лимфоидных органах. Начало специфического иммунного ответа – про-
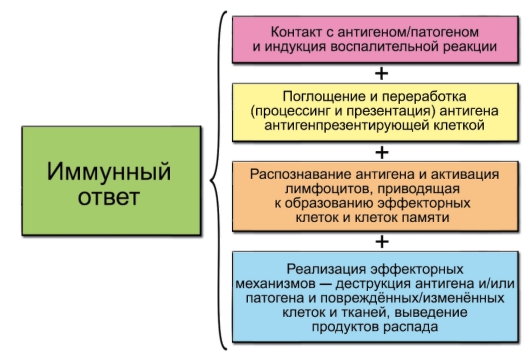
Рис. 1-2. Основные этапы иммунного ответа
лиферация и дифференцировка эффекторных и регуляторных лимфоцитов.
• Деструкция антигена и повреждённых патогеном тканей. При этом одни лимфоциты (помощники – хелперы) «нанимают» для выполнения эффекторных функций другие лимфоциты (эффекторные) и/или воспалительные лейкоциты (нейтрофилы, моноциты, базофилы, эозинофилы), тучные клетки, а также гуморальные литические системы типа комплемента.
• Выведение продуктов распада происходит с участием известных систем выделения.
КЛЕТКИ ИММУННОЙ СИСТЕМЫ
Клетки иммунной системы условно подразделяют на клетки врождённого и адаптивного иммунитета (рис. 1-3). Главным их различием является специфичность распознавания: низкая у первых и высокая у вторых. Существует и третья группа клеток – промежуточная, несущая черты обеих групп. Наличие этой группы показывает единство происхождения и способов защиты организма от чужеродных веществ антигенной природы.
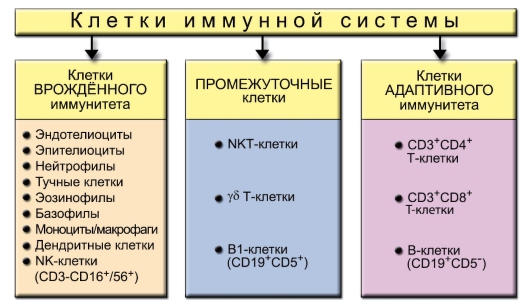
Рис. 1-3. Клетки иммунной системы
В выполнении эффекторных иммунных функций очень важную роль играют АПК, T- и B-лимфоциты и NK-клетки (от англ. Natural Killer – естественный киллер, натуральный киллер).
• Антигенпрезентирующие клетки (АПК). К АПК относят макрофаги, дендритные клетки (включая клетки Лангерганса эпидермиса, М-клетки лимфатических фолликулов пищеварительного тракта и других слизистых оболочек, дендритные эпителиальные клетки тимуса), а также B-лимфоциты. АПК захватывают антиген, обрабатывают его (процессируют) и презентируют антигенные фрагменты на своей поверхности T-лимфоцитам (рис. 1-4).
• T-лимфоциты обусловливают клеточный иммунный ответ, а также помогают отвечать на антиген B-лимфоцитам при гуморальном иммунном ответе. Каждый T-лимфоцит несет на своей поверхности рецептор T-лимфоцитов (TCR – T-Cell Receptor) (см. рис. 5-1, в и рис. 6-1) строго одной специфичности, т.е. взаимодействующий с одним антигеном. T-клетки по экспрессии маркёрных антигенов CD (Cluster Differentiation) подразделяют на CD4+ и CD8+.
– CD4+ Т-лимфоциты (хелперы). Среди T-клеток, экспрессирующих мембранные маркёры CD4, выделяют Т-лимфоциты с эффекторными функциями (Th1, Th2, Th17) и Т-регуляторные клетки (естественные – Treg и индуцированные – Th3, или Tr1).
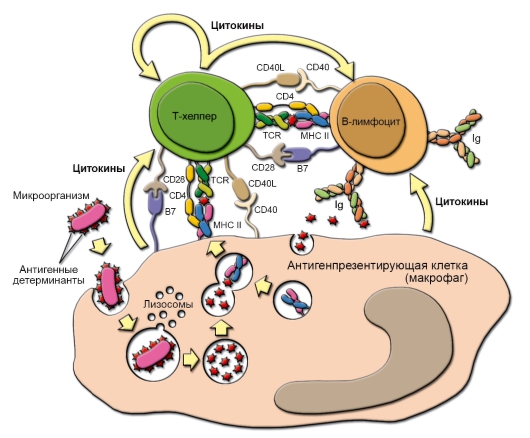
Рис. 1-4. Взаимодействие клеток в ходе гуморального иммунного ответа. Рецептор T-хелпера (TCR) распознаёт антигенную детерминанту (эпитоп), экспрессированную на поверхности антигенпрезентирующей клетки вместе с молекулой главного комплекса гистосовместимости класса II (MHC-II). Во взаимодействии участвует маркёрная молекула T-хелпера – CD4. В результате подобного взаимодействия антигенпрезентирующая клетка секретирует интерлейкин-1 (ИЛ-1), стимулирующий в T-хелпере синтез и секрецию цитокинов, включая ИЛ-2, а также синтез и перенос на плазматическую мембрану T-хелпера рецепторов для ИЛ-2 (ИЛ-2 также стимулирует пролиферацию T-хелперов). Отбор B-лимфоцитов происходит при взаимодействии антигена с вариабельными участками антител (иммуноглобулинов) на поверхности этих клеток (правая часть рисунка). Эпитоп этого антигена в комплексе с молекулой MHC-II распознаёт рецептор T-хелпера, после чего T-лимфоцит секретирует цитокины, стимулирующие пролиферацию B-лимфоцитов и их дифференцировку в плазматические клетки, синтезирующие антитела к данному антигену. Также показаны некоторые мембранные белки (CD40/CD40L и CD28/B7), участвующие в проведении костимуляторных сигналов, необходимых для полноценной активации взаимодействующих клеток (они описаны подробнее в главе 7)
◊ T-хелперы при взаимодействии с АПК специфически распознают антигены и начинают вырабатывать определённый набор цитокинов соответственно типу инфекционного агента: Th2 при взаимодействии с B-клетками индуцируют гуморальный иммунный ответ (см. рис. 1-4), а Th1 – при взаимодействии с макрофагами и цитотоксическими Т-лимфоцитами (ЦТЛ) – клеточный иммунный ответ. Th17 продуцируют ИЛ17 – мощный индуктор тканевого воспаления, привлекающий и активирующий гранулоциты и макрофаги.
◊ Регуляторные T-клетки (Т-регуляторы) контролируют интенсивность иммунного ответа, подавляя активность других субпопуляций Т-лимфоцитов.
– CD8+ Т-лимфоциты. Субпопуляция T-клеток, экспрессирующих мембранные молекулы CD8. Эти клетки выступают в роли ЦТЛ. Они лизируют клетки-мишени, несущие чужеродные или видоизменённые собственные антигены – аутоантигены: например, клетки опухоли, трансплантата, инфицированные вирусом клетки, несущие поверхностные вирусные антигены. Эффекторные функции ЦТЛ реализуются через индукцию образования в клетках-мишенях пор (под действием особых белков – перфоринов) и секрецию в поры специализированных сериновых протеаз – гранзимов. Вызванное этим нарушение осмотического баланса с внеклеточной средой приводит к гибели клетки (рис. 1-5). Под влиянием гранзимов индуцируются процессы запрограммированной гибели клетки – апоптоза.
• Т-клетки памяти – долгоживущие рециркулирующие малые лимфоциты, формируемые при первичном иммунном ответе. Они «запоминают» особенности детерминант антигенов и при повторном распознавании того же антигена развивают быстрый и усиленный ответ. Т-клетки памяти отличаются от наивных и эффекторных Т-лимфоцитов высоким уровнем экспрессии мембранных маркёров активации, меньшей потребностью в провоспалительных медиаторах и корецепторных сигналах для развития вторичного иммунного ответа.
• B-лимфоциты отвечают за гуморальный иммунный ответ. На мембране B-лимфоцитов присутствует рецептор для антигена – мономер IgM. Продолжительность жизни большинства B-лимфоцитов (если они не активируются антигеном!) не превышает 10 сут.
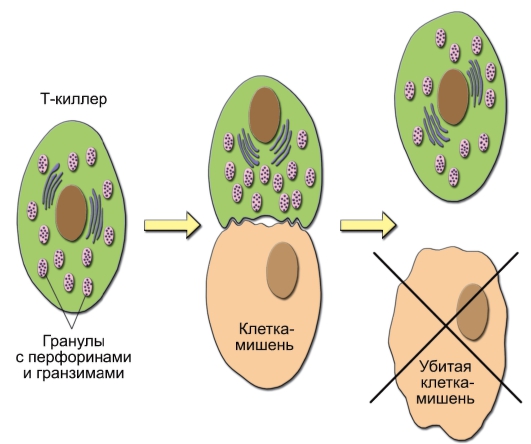
Рис. 1-5. Уничтожение клетки-мишени цитотоксическим T-лимфоцитом (Т-киллером). При сближении цитотоксического T-лимфоцита с клеткоймишенью после специфичного взаимодействия мембранных молекул клетокпартнёров T-лимфоцит убивает клетку-мишень
– Эффекторные B-лимфоциты. Активированные B-лимфоциты размножаются и дифференцируются в плазматические клетки (см. рис. 5-9), вырабатывающие антитела (иммуноглобулины, специфичные к конкретному антигену). При этом плазматические клетки теряют экспрессию специфических рецепторов для антигена.
– B-лимфоциты иммунной памяти – долгоживущие рециркулирующие малые лимфоциты. Они не превращаются в плазматические клетки, но сохраняют иммунную «память» об антигене, с которым когда-то контактировали, за счёт продолжающейся экспрессии рецептора для антигена. Клетки памяти активируются
при повторном распознавании того же антигена. В этом случае B-лимфоциты памяти, при обязательном участии T-хелперов и ряда других факторов, превращаются в плазматические клетки, обеспечивая быстрый синтез большого количества специфичных антител, взаимодействующих с чужеродным антигеном, и развитие эффективного иммунного ответа. • NK-клетки (от англ. Natural Killer – естественный киллер) – лимфоциты, лишённые характерных для T- и B-клеток поверхностных CD-маркёров, а также антигенраспознающих рецепторов – TCR (T Cell Receptor) или BCR (B Cell Receptor). Эти клетки играют важную роль в механизмах врождённого иммунитета (см. главу 3), уничтожают трансформированные, инфицированные вирусами и чужеродные клетки.
Глава 2. КОМПОНЕНТЫ ИММУННОЙ СИСТЕМЫ
Иммунная система состоит из различных компонентов – органов, тканей и клеток, отнесённых к этой системе по функциональному критерию (выполнение иммунной защиты организма) и анатомофизиологическому принципу организации (органно-циркуляторный принцип). В иммунной системе выделяют: первичные органы (костный мозг и тимус), вторичные органы (селезёнка, лимфатические узлы, пейеровы бляшки и др.), а также диффузно расположенную лимфоидную ткань – отдельные лимфоидные фолликулы и их скопления. Особо выделяют лимфоидную ткань, ассоциированную со слизистыми оболочками (Mucosa-Associated Lymphoid Tussue – MALT).
Лимфоидная система – совокупность лимфоидных клеток и органов. Часто лимфоидную систему упоминают как анатомический эквивалент и синоним иммунной системы, однако это не вполне верно. Лимфоидная система является лишь частью иммунной системы: по лимфатическим сосудам клетки иммунной системы мигрируют к лимфоидным органам – месту индукции и формирования иммунного ответа. Кроме того, лимфоидную систему не следует путать с лимфатической – системой лимфатических сосудов, по которым происходит циркуляция лимфы в организме. Лимфоидная система тесно связана с кровеносной и эндокринной системами, а также с покровными тканями – слизистыми оболочками и кожей. Названные системы – основные партнёры, на которые в своей работе опирается иммунная система.
Органно-циркуляторный принцип организации иммунной системы. В организме взрослого здорового человека содержится около 1013 лимфоцитов, т.е. примерно каждая десятая клетка тела – лимфоцит. Анатомо-физиологически иммунная система организована по органноциркуляторному принципу. Это означает, что лимфоциты не являются строго резидентными клетками, а интенсивно рециркулируют между лимфоидными органами и нелимфоидными тканями через лимфатические сосуды и кровь. Так, через каждый лимфатический узел за 1 ч проходит ≈109 лимфоцитов. Миграцию лимфоцитов обусловливают
специфические взаимодействия конкретных молекул на мембранах лимфоцитов и клеток эндотелия стенки сосудов [такие молекулы называют адгезинами, селектинами, интегринами, хоминг-рецепторами (от англ. home – дом, место прописки лимфоцита)]. В результате каждый орган обладает характерным набором популяций лимфоцитов и их клеток-партнёров по иммунному ответу.
Состав иммунной системы. По типу организации выделяют различные органы и ткани иммунной системы (рис. 2-1).
• Кроветворный костный мозг – место локализации стволовых кроветворных клеток (СКК).
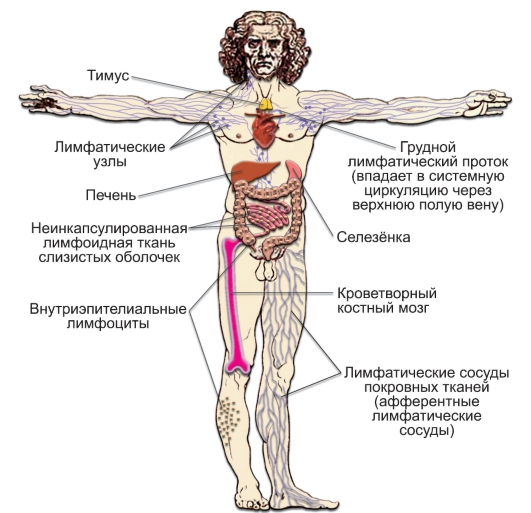
Рис. 2-1. Компоненты иммунной системы
• Инкапсулированные органы: тимус, селезёнка, лимфатические узлы.
• Неинкапсулированная лимфоидная ткань.
– Лимфоидная ткань слизистых оболочек (MALT – MucosalAssociated Lymphoid Tissue). Независимо от локализации содержит внутриэпителиальные лимфоциты слизистой оболочки, а также специализированные образования:
◊ лимфоидная ткань, ассоциированная с пищеварительным трактом (GALT – Gut-Associated Lymphoid Tissue). В ней выделяют миндалины, аппендикс, пейеровы бляшки, lamina propria («собственная пластинка») кишечника, отдельные лимфоидные фолликулы и их группы;
◊ лимфоидная ткань, ассоциированная с бронхами и бронхиолами (BALT – Bronchus-Associated Lymphoid Tissue);
◊лимфоидная ткань, ассоциированная с женскими половыми путями (VALT – Vulvovaginal-Associated Lymphoid Tissue);
◊лимфоидная ткань, ассоциированная с носоглоткой (NALT – Nose-Associated Lymphoid Tissue).
– Особое место в иммунной системе занимает печень. В ней присутствуют субпопуляции лимфоцитов и других клеток иммунной системы, «обслуживающие» в качестве лимфоидного барьера кровь воротной вены, несущей все всасываемые в кишечнике вещества.
– Лимфоидная подсистема кожи – лимфоидная ткань, ассоциированная с кожей (SALT – Skin-Associated Lymphoid Tissue) – диссеминированные внутриэпителиальные лимфоциты и региональные лимфатические узлы и сосуды лимфодренажа.
• Периферическая кровь – транспортно-коммуникационный компонент иммунной системы.
Центральные и периферические органы иммунной системы
• Центральные органы. Кроветворный костный мозг и тимус – центральные органы иммунной системы, именно в них начинается миелопоэз и лимфопоэз – дифференцировка моноцитов и лимфоцитов от СКК до зрелой клетки.
– До рождения плода развитие В-лимфоцитов происходит в фетальной печени. После рождения эта функция передаётся костному мозгу.
– В костном мозге проходят полные «курсы» эритропоэза (образование эритроцитов), миелопоэза (образование нейтрофилов,
моноцитов, эозинофилов, базофилов), мегакариоцитопоэза (формирование тромбоцитов), а также проходит дифференцировка ДК, NK-клеток и В-лимфоцитов. – Предшественники T-лимфоцитов для прохождения лимфопоэза мигрируют из костного мозга в тимус и слизистую оболочку пищеварительного тракта (внетимическое развитие).
• Периферические органы. В периферических лимфоидных органах (селезёнка, лимфатические узлы, неинкапсулированная лимфоидная ткань) зрелые наивные лимфоциты контактируют с антигеном и АПК. Если антигенраспознающий рецептор лимфоцита связывает комплементарный антиген в периферическом лимфоидном органе, то лимфоцит вступает на путь дальнейшей дифференцировки в режиме иммунного ответа, т.е. начинает пролиферировать и продуцировать эффекторные молекулы – цитокины, перфорин, гранзимы и др. Такую додифференцировку лимфоцитов на периферии называют иммуногенезом. В результате иммуногенеза формируются клоны эффекторных лимфоцитов, распознающих антиген и организующих деструкцию как его самого, так и периферических тканей организма, где этот антиген присутствует.
Клетки иммунной системы. В состав иммунной системы входят клетки различного происхождения – мезенхимного, экто- и энтодермального.
• Клетки мезенхимного генеза. К ним относят клетки, дифференцировавшиеся из предшественников лимфо/гематопоэза. Разновидности лимфоцитов – T, B и NK, которые в процессе иммунного ответа кооперируются с различными лейкоцитами – моноцитами/ макрофагами, нейтрофилами, эозинофилами, базофилами, а также ДК, тучными клетками и эндотелиоцитами сосудов. Даже эритроциты вносят свой вклад в реализацию иммунного ответа: транспортируют иммунные комплексы «антиген-антитело-комплемент» в печень и селёзенку для фагоцитоза и разрушения.
• Эпителий. В состав некоторых лимфоидных органов (тимус, некоторые неинкапсулированные лимфоидные ткани) входят эпителиальные клетки эктодермального и энтодермального происхождения.
Гуморальные факторы. Помимо клеток, «иммунная материя» представлена растворимыми молекулами – гуморальными факторами. Это продукты B-лимфоцитов – антитела (они же иммуноглобулины) и растворимые медиаторы межклеточных взаимодействий – цитокины.
ТИМУС
В тимусе (thymus) проходит лимфопоэз значительной части T-лимфоцитов («Т» происходит от слова «Thymus»). Тимус состоит из 2 долей, каждая из которых окружена капсулой из соединительной ткани. Перегородки, идущие от капсулы, разделяют тимус на дольки. В каждой дольке тимуса (рис. 2-2) выделяют 2 зоны: по периферии – корковая (cortex), в центре – мозговая (medulla). Объём органа заполнен эпителиальным каркасом (эпителий), в котором располагаются тимоциты (незрелые Т-лимфоциты тимуса), ДК и макрофаги. ДК расположены преимущественно в зоне, переходной между корковой и мозговой. Макрофаги присутствуют во всех зонах.
• Эпителиальные клетки своими отростками обхватывают лимфоциты тимуса (тимоциты), поэтому их называют «nurse cells» (клетки-«сиделки» или клетки-«няньки»). Эти клетки не только поддерживают развивающиеся тимоциты, но также продуцируют
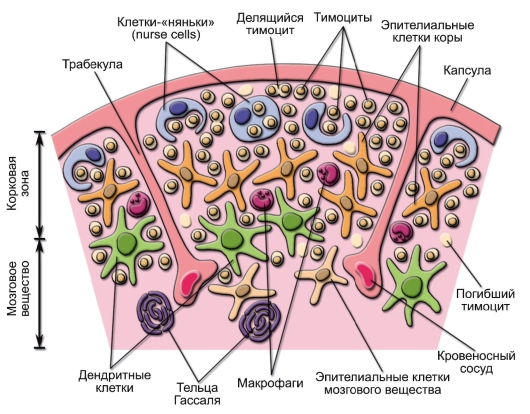
Рис. 2-2. Строение дольки тимуса
цитокины ИЛ-1, ИЛ-3, ИЛ-6, ИЛ-7, LIF, GM-CSF и экспрессируют молекулы адгезии LFA-3 и ICAM-1, комплементарные молекулам адгезии на поверхности тимоцитов (CD2 и LFA-1). В мозговой зоне долек расположены плотные образования из скрученных эпителиальных клеток – тельца Гассаля (тельца тимуса) – места компактного скопления дегенÐ
Иммунитет – особое биологическое свойство многоклеточных организмов, направленное на защиту от генетически чужеродных факторов: микроорганизмов (бактерий, вирусов, простейших, грибов), инородных молекул и др. Иммунитет также обеспечивает невосприимчивость организма к инфекции при повторной встрече с патогеном. В медицинском смысле этот термин употребляли ещё до нашей эры в значениях: неприкосновенный, чистый, не затронутый заболеванием, невредимый, находящийся под хорошей защитой, устойчивый к заразной болезни.
Совокупность органных, тканевых, клеточных и молекулярных компонентов, функцией которых является осуществление иммунной защиты, называется иммунной системой. Иммунология – наука о строении и функциях иммунной системы как в норме, так и при различных патологических состояниях, в том числе и при нарушениях самой иммунной системы – иммунопатологиях.
Иммунную защиту обеспечивают два механизма: врождённый и адаптивный.
Врождённый иммунитет является присущей каждому организму с рождения, генетически закреплённой способностью противостоять инфекции. Это передовая линия обороны организма против патогенов, пытающихся проникнуть или уже проникших в покровные ткани или внутреннюю среду. Врождённый иммунитет срабатывает мгновенно или в течение первых нескольких часов после контакта с патогеном (возбудители, выделяемые ими токсины и другие чужеродные молекулы). Он включает четыре основных уровня защиты: анатомический, физиологический, фагоцитарный и воспалительный – покровные ткани, фагоциты, микробоцидные гуморальные вещества (протеазы, сильные окислители и свободные радикалы, продуцируемые фагоцитами, эндогенные противомикробные пептиды и др.), сосудистые реакции. Первичные рецепторы врождённого иммунитета – это молекулы многоклеточных, позволяющие «считывать» эволюционную память – информацию о том, чем отличаются микроорганизмы от собственных клеток.
Эти рецепторы способны распознавать консервативные молекулярные структуры – РАМР (Pathogen-Associated Molecular Patterns), характерные для групп сходных микроорганизмов. В настоящее время постоянно открывают новые патогенраспознающие рецепторы врождённого иммунитета. К ним относят мембраносвязанные паттернраспознающие рецепторы (Pattern Recognition Receptors, PRR), а также растворимые рецепторы – ряд белков сыворотки крови: C-реактивный белок (СРБ), маннозосвязывающий лектин (MBL – Mannose-Binding Lectin), компоненты комплемента.
Собственные возможности клеток врождённого иммунитета санировать организм от проникшего патогена часто недостаточны. Множество патогенов приспособилось выживать в присутствии факторов врождённой резистентности к инфекциям. Именно поэтому в процессе эволюции, начиная с челюстных рыб, к врождённому иммунитету добавился адаптивный иммунитет – специфический. Материальные носители адаптивного иммунитета – лимфоциты. Уникальное и отличительное свойство лимфоцитов как множества клеток – способность распознавать почти неограниченное (1018) разнообразие молекулярных объектов – антигенов. Лимфоциты характеризуются экспрессией Т-клеточных (TCR) или В-клеточных (BCR) рецепторов, распознающих только одну антигенную детерминанту либо небольшое число структурно очень близких детерминант, и поэтому, в отличие от PRR, обладающих высокой специфичностью (рис. 1-1).
Адаптивный (приобретённый) иммунитет формируется в течение жизни индивидуума. Активно приобретённый иммунитет – состояние невосприимчивости к инфекции после перенесённого инфекционного заболевания или после вакцинации (сам организм вырабатывает соответствующие антитела). Пассивно приобретённый иммунитет – состояние невосприимчивости к инфекции в результате поступления в организм уже готовых антител от матери или в результате инъекции (сам организм эти антитела не вырабатывает).
ИММУННЫЙ ОТВЕТ
Врождённая и адаптивная системы защиты организма включают клеточный и гуморальный компоненты и активно взаимодействуют друг с другом в процессе иммунного ответа. Иммунный ответ – многоэтапный процесс, заключающийся в распознавании и деструкции патогена и повреждённых им тканей. В его основе лежит уникальное свойство иммун-
Рис. 1-1. Сравнение врождённого и адаптивного иммунитета
ной системы отличать «свое» («sef») от «чужого» («nonself») и применять по отношению к «чужому» механизмы нейтрализации и уничтожения, а именно – иммунные реакции. Распознавание множества чужеродных антигенов происходит благодаря наличию в организме огромного разнообразия образующихся в тимусе клонов T-лимфоцитов (отбор клонов) и при помощи комплекса генов главного комплекса гистосовместимости (MHC) классов I и II. Нейтрализацию «чужого» осуществляют цирку-
лирующие в жидкостях организма антитела (гуморальный иммунитет) и цитотоксические лимфоциты (клеточный иммунитет).
Таким образом, основными характеристиками адаптивного иммунного ответа являются умение различать собственные антигены от чужеродных, специфичность и иммунная память.
• Различение «своего» и «чужого» выражается в дифференциации компонентов собственных тканей организма и чужеродных молекул. Специфическую неотвечаемость организма на собственные антигены обозначают как иммунную толерантность. Если же организм воспринимает собственные компоненты как чужеродные, развивается аутоиммунный ответ.
• Специфичность иммунного ответа проявляется в том, что иммунитет, сформировавшийся в результате контакта с определённым антигеном, будет обеспечивать защиту только против этого антигена.
• Иммунная память формируется в результате адаптивного иммунного ответа против конкретного возбудителя и сохраняется, как правило, в течение всей последующей жизни организма, защищая его от повторной инфекции, вызываемой этим же возбудителем. Такой механизм обеспечивается способностью иммунной системы к «запоминанию» антигенных детерминант патогена за счёт образования клеток иммунной памяти. Наличие иммунной памяти обусловливает развитие ускоренного и усиленного ответа (вторичный иммунный ответ) при повторном контакте с антигеном. Формирование иммунной памяти является основной целью вакцинации, т.е. процесса естественного или искусственного формирования иммунной защиты против определённой инфекции.
Схема развития иммунного ответа представлена на рис. 1-2. Содержание отдельных этапов иммунного ответа раскрыто ниже.
• Воспаление: участвуют клетки, поглощающие антигены (фагоциты, антигенпрезентирующие клетки) – в частности, дендритные клетки (ДК), макрофаги, эндотелиальные и другие клетки. Выделяются провоспалительные цитокины и хемокины.
• Переработка антигена (процессинг). После поглощения антигена антигенпрезентирующей клеткой (АПК) происходит его процессинг (расщепление и встраивание в молекулы MHC) и презентация на поверхности клетки. Это необходимо для распознавания антигена Т-лимфоцитами.
• Распознавание антигена происходит в периферических лимфоидных органах. Начало специфического иммунного ответа – про-
Рис. 1-2. Основные этапы иммунного ответа
лиферация и дифференцировка эффекторных и регуляторных лимфоцитов.
• Деструкция антигена и повреждённых патогеном тканей. При этом одни лимфоциты (помощники – хелперы) «нанимают» для выполнения эффекторных функций другие лимфоциты (эффекторные) и/или воспалительные лейкоциты (нейтрофилы, моноциты, базофилы, эозинофилы), тучные клетки, а также гуморальные литические системы типа комплемента.
• Выведение продуктов распада происходит с участием известных систем выделения.
КЛЕТКИ ИММУННОЙ СИСТЕМЫ
Клетки иммунной системы условно подразделяют на клетки врождённого и адаптивного иммунитета (рис. 1-3). Главным их различием является специфичность распознавания: низкая у первых и высокая у вторых. Существует и третья группа клеток – промежуточная, несущая черты обеих групп. Наличие этой группы показывает единство происхождения и способов защиты организма от чужеродных веществ антигенной природы.
Рис. 1-3. Клетки иммунной системы
В выполнении эффекторных иммунных функций очень важную роль играют АПК, T- и B-лимфоциты и NK-клетки (от англ. Natural Killer – естественный киллер, натуральный киллер).
• Антигенпрезентирующие клетки (АПК). К АПК относят макрофаги, дендритные клетки (включая клетки Лангерганса эпидермиса, М-клетки лимфатических фолликулов пищеварительного тракта и других слизистых оболочек, дендритные эпителиальные клетки тимуса), а также B-лимфоциты. АПК захватывают антиген, обрабатывают его (процессируют) и презентируют антигенные фрагменты на своей поверхности T-лимфоцитам (рис. 1-4).
• T-лимфоциты обусловливают клеточный иммунный ответ, а также помогают отвечать на антиген B-лимфоцитам при гуморальном иммунном ответе. Каждый T-лимфоцит несет на своей поверхности рецептор T-лимфоцитов (TCR – T-Cell Receptor) (см. рис. 5-1, в и рис. 6-1) строго одной специфичности, т.е. взаимодействующий с одним антигеном. T-клетки по экспрессии маркёрных антигенов CD (Cluster Differentiation) подразделяют на CD4+ и CD8+.
– CD4+ Т-лимфоциты (хелперы). Среди T-клеток, экспрессирующих мембранные маркёры CD4, выделяют Т-лимфоциты с эффекторными функциями (Th1, Th2, Th17) и Т-регуляторные клетки (естественные – Treg и индуцированные – Th3, или Tr1).
Рис. 1-4. Взаимодействие клеток в ходе гуморального иммунного ответа. Рецептор T-хелпера (TCR) распознаёт антигенную детерминанту (эпитоп), экспрессированную на поверхности антигенпрезентирующей клетки вместе с молекулой главного комплекса гистосовместимости класса II (MHC-II). Во взаимодействии участвует маркёрная молекула T-хелпера – CD4. В результате подобного взаимодействия антигенпрезентирующая клетка секретирует интерлейкин-1 (ИЛ-1), стимулирующий в T-хелпере синтез и секрецию цитокинов, включая ИЛ-2, а также синтез и перенос на плазматическую мембрану T-хелпера рецепторов для ИЛ-2 (ИЛ-2 также стимулирует пролиферацию T-хелперов). Отбор B-лимфоцитов происходит при взаимодействии антигена с вариабельными участками антител (иммуноглобулинов) на поверхности этих клеток (правая часть рисунка). Эпитоп этого антигена в комплексе с молекулой MHC-II распознаёт рецептор T-хелпера, после чего T-лимфоцит секретирует цитокины, стимулирующие пролиферацию B-лимфоцитов и их дифференцировку в плазматические клетки, синтезирующие антитела к данному антигену. Также показаны некоторые мембранные белки (CD40/CD40L и CD28/B7), участвующие в проведении костимуляторных сигналов, необходимых для полноценной активации взаимодействующих клеток (они описаны подробнее в главе 7)
◊ T-хелперы при взаимодействии с АПК специфически распознают антигены и начинают вырабатывать определённый набор цитокинов соответственно типу инфекционного агента: Th2 при взаимодействии с B-клетками индуцируют гуморальный иммунный ответ (см. рис. 1-4), а Th1 – при взаимодействии с макрофагами и цитотоксическими Т-лимфоцитами (ЦТЛ) – клеточный иммунный ответ. Th17 продуцируют ИЛ17 – мощный индуктор тканевого воспаления, привлекающий и активирующий гранулоциты и макрофаги.
◊ Регуляторные T-клетки (Т-регуляторы) контролируют интенсивность иммунного ответа, подавляя активность других субпопуляций Т-лимфоцитов.
– CD8+ Т-лимфоциты. Субпопуляция T-клеток, экспрессирующих мембранные молекулы CD8. Эти клетки выступают в роли ЦТЛ. Они лизируют клетки-мишени, несущие чужеродные или видоизменённые собственные антигены – аутоантигены: например, клетки опухоли, трансплантата, инфицированные вирусом клетки, несущие поверхностные вирусные антигены. Эффекторные функции ЦТЛ реализуются через индукцию образования в клетках-мишенях пор (под действием особых белков – перфоринов) и секрецию в поры специализированных сериновых протеаз – гранзимов. Вызванное этим нарушение осмотического баланса с внеклеточной средой приводит к гибели клетки (рис. 1-5). Под влиянием гранзимов индуцируются процессы запрограммированной гибели клетки – апоптоза.
• Т-клетки памяти – долгоживущие рециркулирующие малые лимфоциты, формируемые при первичном иммунном ответе. Они «запоминают» особенности детерминант антигенов и при повторном распознавании того же антигена развивают быстрый и усиленный ответ. Т-клетки памяти отличаются от наивных и эффекторных Т-лимфоцитов высоким уровнем экспрессии мембранных маркёров активации, меньшей потребностью в провоспалительных медиаторах и корецепторных сигналах для развития вторичного иммунного ответа.
• B-лимфоциты отвечают за гуморальный иммунный ответ. На мембране B-лимфоцитов присутствует рецептор для антигена – мономер IgM. Продолжительность жизни большинства B-лимфоцитов (если они не активируются антигеном!) не превышает 10 сут.
Рис. 1-5. Уничтожение клетки-мишени цитотоксическим T-лимфоцитом (Т-киллером). При сближении цитотоксического T-лимфоцита с клеткоймишенью после специфичного взаимодействия мембранных молекул клетокпартнёров T-лимфоцит убивает клетку-мишень
– Эффекторные B-лимфоциты. Активированные B-лимфоциты размножаются и дифференцируются в плазматические клетки (см. рис. 5-9), вырабатывающие антитела (иммуноглобулины, специфичные к конкретному антигену). При этом плазматические клетки теряют экспрессию специфических рецепторов для антигена.
– B-лимфоциты иммунной памяти – долгоживущие рециркулирующие малые лимфоциты. Они не превращаются в плазматические клетки, но сохраняют иммунную «память» об антигене, с которым когда-то контактировали, за счёт продолжающейся экспрессии рецептора для антигена. Клетки памяти активируются
при повторном распознавании того же антигена. В этом случае B-лимфоциты памяти, при обязательном участии T-хелперов и ряда других факторов, превращаются в плазматические клетки, обеспечивая быстрый синтез большого количества специфичных антител, взаимодействующих с чужеродным антигеном, и развитие эффективного иммунного ответа. • NK-клетки (от англ. Natural Killer – естественный киллер) – лимфоциты, лишённые характерных для T- и B-клеток поверхностных CD-маркёров, а также антигенраспознающих рецепторов – TCR (T Cell Receptor) или BCR (B Cell Receptor). Эти клетки играют важную роль в механизмах врождённого иммунитета (см. главу 3), уничтожают трансформированные, инфицированные вирусами и чужеродные клетки.
Иммунная система состоит из различных компонентов – органов, тканей и клеток, отнесённых к этой системе по функциональному критерию (выполнение иммунной защиты организма) и анатомофизиологическому принципу организации (органно-циркуляторный принцип). В иммунной системе выделяют: первичные органы (костный мозг и тимус), вторичные органы (селезёнка, лимфатические узлы, пейеровы бляшки и др.), а также диффузно расположенную лимфоидную ткань – отдельные лимфоидные фолликулы и их скопления. Особо выделяют лимфоидную ткань, ассоциированную со слизистыми оболочками (Mucosa-Associated Lymphoid Tussue – MALT).
Лимфоидная система – совокупность лимфоидных клеток и органов. Часто лимфоидную систему упоминают как анатомический эквивалент и синоним иммунной системы, однако это не вполне верно. Лимфоидная система является лишь частью иммунной системы: по лимфатическим сосудам клетки иммунной системы мигрируют к лимфоидным органам – месту индукции и формирования иммунного ответа. Кроме того, лимфоидную систему не следует путать с лимфатической – системой лимфатических сосудов, по которым происходит циркуляция лимфы в организме. Лимфоидная система тесно связана с кровеносной и эндокринной системами, а также с покровными тканями – слизистыми оболочками и кожей. Названные системы – основные партнёры, на которые в своей работе опирается иммунная система.
Органно-циркуляторный принцип организации иммунной системы. В организме взрослого здорового человека содержится около 1013 лимфоцитов, т.е. примерно каждая десятая клетка тела – лимфоцит. Анатомо-физиологически иммунная система организована по органноциркуляторному принципу. Это означает, что лимфоциты не являются строго резидентными клетками, а интенсивно рециркулируют между лимфоидными органами и нелимфоидными тканями через лимфатические сосуды и кровь. Так, через каждый лимфатический узел за 1 ч проходит ≈109 лимфоцитов. Миграцию лимфоцитов обусловливают
специфические взаимодействия конкретных молекул на мембранах лимфоцитов и клеток эндотелия стенки сосудов [такие молекулы называют адгезинами, селектинами, интегринами, хоминг-рецепторами (от англ. home – дом, место прописки лимфоцита)]. В результате каждый орган обладает характерным набором популяций лимфоцитов и их клеток-партнёров по иммунному ответу.
Состав иммунной системы. По типу организации выделяют различные органы и ткани иммунной системы (рис. 2-1).
• Кроветворный костный мозг – место локализации стволовых кроветворных клеток (СКК).
Рис. 2-1. Компоненты иммунной системы
• Инкапсулированные органы: тимус, селезёнка, лимфатические узлы.
• Неинкапсулированная лимфоидная ткань.
– Лимфоидная ткань слизистых оболочек (MALT – MucosalAssociated Lymphoid Tissue). Независимо от локализации содержит внутриэпителиальные лимфоциты слизистой оболочки, а также специализированные образования:
◊ лимфоидная ткань, ассоциированная с пищеварительным трактом (GALT – Gut-Associated Lymphoid Tissue). В ней выделяют миндалины, аппендикс, пейеровы бляшки, lamina propria («собственная пластинка») кишечника, отдельные лимфоидные фолликулы и их группы;
◊ лимфоидная ткань, ассоциированная с бронхами и бронхиолами (BALT – Bronchus-Associated Lymphoid Tissue);
◊лимфоидная ткань, ассоциированная с женскими половыми путями (VALT – Vulvovaginal-Associated Lymphoid Tissue);
◊лимфоидная ткань, ассоциированная с носоглоткой (NALT – Nose-Associated Lymphoid Tissue).
– Особое место в иммунной системе занимает печень. В ней присутствуют субпопуляции лимфоцитов и других клеток иммунной системы, «обслуживающие» в качестве лимфоидного барьера кровь воротной вены, несущей все всасываемые в кишечнике вещества.
– Лимфоидная подсистема кожи – лимфоидная ткань, ассоциированная с кожей (SALT – Skin-Associated Lymphoid Tissue) – диссеминированные внутриэпителиальные лимфоциты и региональные лимфатические узлы и сосуды лимфодренажа.
• Периферическая кровь – транспортно-коммуникационный компонент иммунной системы.
Центральные и периферические органы иммунной системы
• Центральные органы. Кроветворный костный мозг и тимус – центральные органы иммунной системы, именно в них начинается миелопоэз и лимфопоэз – дифференцировка моноцитов и лимфоцитов от СКК до зрелой клетки.
– До рождения плода развитие В-лимфоцитов происходит в фетальной печени. После рождения эта функция передаётся костному мозгу.
– В костном мозге проходят полные «курсы» эритропоэза (образование эритроцитов), миелопоэза (образование нейтрофилов,
моноцитов, эозинофилов, базофилов), мегакариоцитопоэза (формирование тромбоцитов), а также проходит дифференцировка ДК, NK-клеток и В-лимфоцитов. – Предшественники T-лимфоцитов для прохождения лимфопоэза мигрируют из костного мозга в тимус и слизистую оболочку пищеварительного тракта (внетимическое развитие).
• Периферические органы. В периферических лимфоидных органах (селезёнка, лимфатические узлы, неинкапсулированная лимфоидная ткань) зрелые наивные лимфоциты контактируют с антигеном и АПК. Если антигенраспознающий рецептор лимфоцита связывает комплементарный антиген в периферическом лимфоидном органе, то лимфоцит вступает на путь дальнейшей дифференцировки в режиме иммунного ответа, т.е. начинает пролиферировать и продуцировать эффекторные молекулы – цитокины, перфорин, гранзимы и др. Такую додифференцировку лимфоцитов на периферии называют иммуногенезом. В результате иммуногенеза формируются клоны эффекторных лимфоцитов, распознающих антиген и организующих деструкцию как его самого, так и периферических тканей организма, где этот антиген присутствует.
Клетки иммунной системы. В состав иммунной системы входят клетки различного происхождения – мезенхимного, экто- и энтодермального.
• Клетки мезенхимного генеза. К ним относят клетки, дифференцировавшиеся из предшественников лимфо/гематопоэза. Разновидности лимфоцитов – T, B и NK, которые в процессе иммунного ответа кооперируются с различными лейкоцитами – моноцитами/ макрофагами, нейтрофилами, эозинофилами, базофилами, а также ДК, тучными клетками и эндотелиоцитами сосудов. Даже эритроциты вносят свой вклад в реализацию иммунного ответа: транспортируют иммунные комплексы «антиген-антитело-комплемент» в печень и селёзенку для фагоцитоза и разрушения.
• Эпителий. В состав некоторых лимфоидных органов (тимус, некоторые неинкапсулированные лимфоидные ткани) входят эпителиальные клетки эктодермального и энтодермального происхождения.
Гуморальные факторы. Помимо клеток, «иммунная материя» представлена растворимыми молекулами – гуморальными факторами. Это продукты B-лимфоцитов – антитела (они же иммуноглобулины) и растворимые медиаторы межклеточных взаимодействий – цитокины.
ТИМУС
В тимусе (thymus) проходит лимфопоэз значительной части T-лимфоцитов («Т» происходит от слова «Thymus»). Тимус состоит из 2 долей, каждая из которых окружена капсулой из соединительной ткани. Перегородки, идущие от капсулы, разделяют тимус на дольки. В каждой дольке тимуса (рис. 2-2) выделяют 2 зоны: по периферии – корковая (cortex), в центре – мозговая (medulla). Объём органа заполнен эпителиальным каркасом (эпителий), в котором располагаются тимоциты (незрелые Т-лимфоциты тимуса), ДК и макрофаги. ДК расположены преимущественно в зоне, переходной между корковой и мозговой. Макрофаги присутствуют во всех зонах.
• Эпителиальные клетки своими отростками обхватывают лимфоциты тимуса (тимоциты), поэтому их называют «nurse cells» (клетки-«сиделки» или клетки-«няньки»). Эти клетки не только поддерживают развивающиеся тимоциты, но также продуцируют
Рис. 2-2. Строение дольки тимуса
цитокины ИЛ-1, ИЛ-3, ИЛ-6, ИЛ-7, LIF, GM-CSF и экспрессируют молекулы адгезии LFA-3 и ICAM-1, комплементарные молекулам адгезии на поверхности тимоцитов (CD2 и LFA-1). В мозговой зоне долек расположены плотные образования из скрученных эпителиальных клеток – тельца Гассаля (тельца тимуса) – места компактного скопления дегенÐ